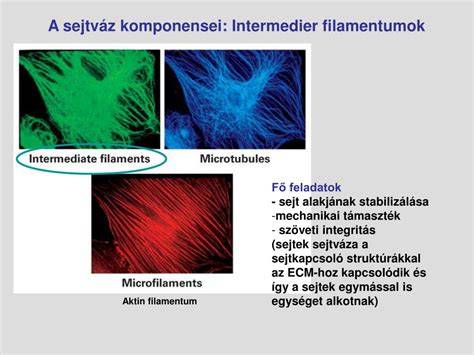
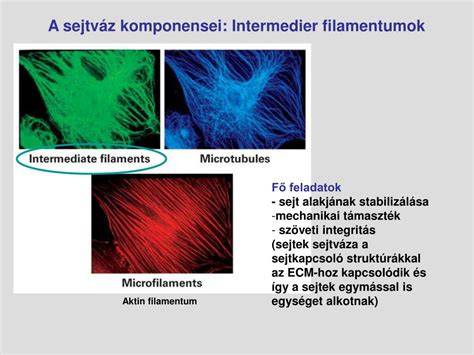
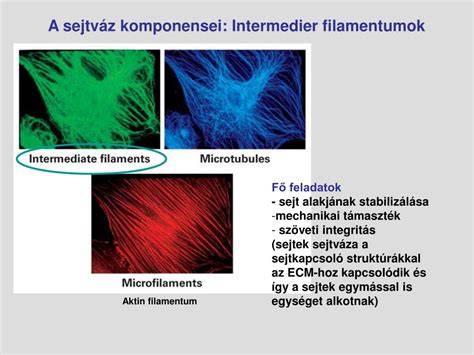
Az intermedier filamentumok a citoszkeleton erős, mégis hajlékony elemei, amelyek elsősorban a sejtek és szövetek mechanikai stabilitását biztosítják. A mintegy 8-10 nm, illetve körülbelül 10 nm átmérőjű filamentumok a sejtmag körül kiterjedt, a sejtek perifériája felé húzódó hálózatot alkotnak, és kapcsolatot létesítenek a plazmamembránnal, gyakran a sejtkapcsoló struktúrák területén.
Az intermedier filamentumok a mikrotubulusokkal és az aktinfilamentumokkal együtt alkotják a citoszkeleton komplex, dinamikus háromdimenziós hálózatát. Főként mechanikai terhelést vezetnek el, de részt vesznek a sejt alakjának fenntartásában, a növekedésben, a differenciációban, a jelátvitelben, a sejtmigrációban, a sejtorganellumok térbeli szervezésében, valamint a mitokondriumok alakjának, elhelyezkedésének és működésének szabályozásában.
Az intermedier filamentumok helye a citoszkeletonban
Az eukarióta sejt citoplazmájában nem membránjellegű struktúrák is vannak, ezek nagyrészt a citoszkeleton komponensei. A mikrotubulusok és aktinfonalak mellett a legtöbb eukariotákban egy további vázrendszer is kialakult, az intermedier filamentumok (IF) hálózata.
A mikrotubulusok kb. 22 nm átmérjű, henger alakú struktúrák. A mikrotubulusok dinamikus sejtorganellumok, folyamatosan épülnek fel és bomlanak le (polimerizációs-depolimerizáció), a sejt igényeitől függően. A nem izom típusú sejtek citoszkeletonjának meghatározó komponensei az aktin mikrofilamentumok. Ezek általában 5-7 nm átmérjűek, s gyakran képeznek kötegeket a plazmamembrán közelében.
Az “intermedier” elnevezés arra utal, hogy vastagságuk az aktinfonalak (7-8nm) és a mikrotubulusok (25nm) mérettartománya közé esik. Intermediate filaments (Fig. 35-1) are strong but flexible polymers that provide mechanical support for cells ranging from bacteria to human tissues. These filaments were named intermediate because their diameter of about 10 nm is intermediate between the diameters of the thick and thin filaments in striated muscles.
| Citoszkeletális elem | Átmérő | Jellegzetes funkció |
|---|---|---|
| Aktinfilamentum | 5-7 nm | Sejtmozgás, membránmozgás, kontrakció |
| Intermedier filamentum | 8-10 nm | Mechanikai stabilitás és terheléselosztás |
| Mikrotubulus | kb. 22 nm | Sejten belüli transzport, orsófonalak, organellumszervezés |
Az intermedier filamentum hálózat térbeli szerveződése
Az intermedier filamentumok a sejtben jól kiterjedt hálózatot alkotnak a sejtmag körül, ahonnan a sejt perifériája felé terjedve a plazmamembránnal létesítenek kapcsolatot, gyakran a sejtkapcsoló struktúrák területén. Cytoplasmic intermediate filaments tend to cluster into wavy bundles that vary in compactness, forming a branching network between the plasma membrane and the nucleus.
Igen fejlett a sejtváz intermedier filamentum rendszere azokban a sejtekben, amelyek erős mechanikai hatásoknak vannak kitéve, vagy erős mechanikai támaszt igényel a sejt, illetve szövet (pl. az izomsejtekben, az epitéliális sejtekben és idegsejtek axonjaiban). A sejtváz kevésbé dinamikus elemei, elsősorban a sejt alakjának stabilizálásában játszanak szerepet.
A continuum of intermediate filaments and junctions prevents excessive stretching of the cells and gives tissues such as epithelia their mechanical integrity. Hair, which is built from cross-linked intermediate filaments, nicely illustrates their flexibility and high tensile strength.
Az intermedier filamentumok szerkezete
Az IF fehérjék hosszú, pálcikaalakú molekulák, melyek három részre, az N-terminális fejre, a C-terminális farokra és kettőt összekötő centrális szakaszra (rod domén) tagolódnak. Minden intermedier filamentumfehérje rendelkezik egy N-terminális feji résszel, egy C-terminális farok résszel, és a kettő között egy centrális „rúdszerű” doménnel, amely α-hélix szerkezetű és ugyanazon aminosav motívumok tandem ismétlődéseit tartalmazza.
All intermediate filament proteins possess an α-helical coiled-coil domain that forms the core of the filaments, while the flanking N- and C-terminal domains vary considerably in size. Each intermediate filament protein isoform has a unique amino acid sequence, but all have a rod-like domain between head and tail domains of variable length at the two ends.
A rod általában két α-hélix párhuzamos coiled-coil szerkezete, rendszerint körülbelül 47 nm hosszúságú. A citoplazmatikus IF fehérjékben a centrális szakasz kb. 310, a laminokban körülbelül 350 aminosavból áll. A laminok farki régiójában NLS (nukleáris lokalizációs szignál) és egy speciális, kb.100 aminosav hosszúságú Ig (immunoglobulin-szerű) domén is kimutatható, melyek a citoplazmatikus IF fehérjékből hiányoznak.
A centrális rúddoménben hét aminosavból álló ismétlődő motívum található. Ez a heptád repeat segíti a monomerek magasabb szerveződési szintekbe, dimerekké és tetramerekké történő összeállását. A rod doménben a pozitív és negatív töltésű szakaszok váltakozása megfelelő elrendeződés esetén kiegészítő elektrosztatikus kölcsönhatásokat biztosít a filamentumok összeépüléséhez.
Az intermedier filamentumok monomerjei nem globuláris fehérjék, mint az aktin és a tubulin esetében, hanem hosszú fibrózus molekulák három jól elkülöníthető doménnel. A kevésbé ismert N- és C-terminális domének befolyásolhatják az összeszerelődést, és egyes esetekben a filamentum felszínéről kinyúlva más sejtes komponensekkel léphetnek kölcsönhatásba.
A filamentumok összeépülése
Az intermedier filamentumok felépítése dimerképződéssel indul: két monomer rod doménjeikkel egymás köré tekeredve összekapcsolódik parallel módon, vagyis a két monomer N- illetve C-terminálisai egymás mellett helyezkednek el. A következő lépésben két dimer összeáll tetramerré.
A tetramerben a dimerek antiparallel módon és egymáshoz képest kissé elcsúszva rendeződnek el. Many intermediate filament molecules form stable, partially overlapping, antiparallel molecular dimers, referred to as tetramers, that are believed to be intermediates in polymer assembly.
A tetramerek több protofilamentummá szerveződnek, majd ezek oldalirányú társulásával és végeik összekapcsolódásával jön létre a tipikus, körülbelül 10 nm átmérőjű intermedier filamentum. A leggyakrabban használt modell szerint négy protofibrillum társul a 10 nm-es filamentum kialakításához, míg más leírások nyolc protofilamentum összekapcsolódását emelik ki.
Az intermedier filamentum szerveződése a kötél szerkezetéhez hasonlítható: az antiparallel tetramerek protofilamentumokat alkotnak, a protofilamentumok protofibrillumokká kapcsolódnak, majd ezekből alakul ki a végső filamentum. A tetramerek kapcsolódása olyan, mint ahogy a dominó kockáit illesztjük egymás mellé.
Az így létrejövő filamentum rendkívül stabil, húzásnak ellenálló struktúra. Mérések szerint eredeti hosszának hármszorosára is nyújtható anélkül, hogy elszakadna. A kötélhez hasonló felépítés egyszerre teszi lehetővé a nagy szakítószilárdságot és a hajlékonyságot.
Polaritás és dinamika
Az antiparallel elrendeződés következtében az intermedier filamentum szál két vége nem különbözik egymástól, nincs “plusz” és “minusz” vég. Since tetramers lack polarity, intermediate filaments are considered to be apolar, that is, both ends of the filament are equivalent.
Ez lényeges különbség az aktinfilamentumokhoz és a mikrotubulusokhoz képest, amelyek polaritása több funkciójuk, köztük a motorfehérjék egyirányú mozgása szempontjából meghatározó. Az intermedier filamentumokhoz nem kapcsolódnak motorfehérjék.
A tubulintól és aktintól eltérően, az IF fehérjék nem kötnek nukleotidokat, ezért polimerizációjuk sem kapcsolt nukleotid hidrolízishez. Az intermedier filamentumok polimerizációja nem igényel ATP vagy GTP formájú energiát.
Mechanikai stabilitásuk ellenére az IF-ek nem statikus struktúrák. Mérések szerint a filamentumokon belül alegységeik, vagyis tetramerek, kicserélődhetnek, és foszforilálás hatására a filamentum szétszerelődik.
Az intermedier filamentumok fő típusai
Az átmeneti vagy intermedier filamentumok elnevezés a filamentumoknak egy nagyon heterogén csoportjára utal. Az átmeneti filamentumokat alkotó fehérjék, illetve a filamentumok sejten belüli elhelyezkedése alapján öt fő csoportot szoktunk elkülöníteni: a citokeratin vagy prekeratin filamentumokat, a vimentint, a dezmint, a neurofilamentumokat és a gliális rostos savas proteint.
Az IF fehérjék változatos családot alkotnak, humán szervezetben kb. 70 különböző IF fehérjét kódoló gén ismert. Egyes tagjaik a citoplazmában, míg mások, a laminok, a magban hoznak létre IF hálózatot.
| Alosztály vagy típus | Jellegzetes fehérjék | Jellemző előfordulás | Polimer típusa |
|---|---|---|---|
| I. és II. alosztály | Savas és bázikus keratinok | Epitéliális sejtek | Obligát heteropolimer |
| III. alosztály | Vimentin, dezmin, GFAP | Mezenchimális sejtek, izomsejtek, gliasejtek | Homopolimer |
| IV. alosztály | NF-L, NF-M, NF-H | Neuronok, axonok | Kopolimer |
| V. alosztály | Lamin A, B1, B2, C | Sejtmag belső felszíne | Homopolimer |
Keratinfilamentumok
A legnépesebb csoportot a savas (I. alosztály) és bázikus (II. alosztály) keratinok alkotják, az elnevezés az izoelektromos pontok különbözőségére utal. Epiteliális sejtekben expresszálódnak és obligát heteropolimerekbe szerveződnek, melyekben 1:1 arányban fordul elő valamelyik savas, illetve bázikus keratin-polipeptid.
Kb. 30 féle citokeratin ismert, illetve egyes leírások legalább 20 típust említenek. A keratinok a hámsejtekben olyan hálózatot hoznak létre, amely stabilizálja a sejtet a fizikai erőkkel szemben, és megerősíti a sejtek közötti deszmoszómás kapcsolatokat.
Vimentin, dezmin és GFAP
A III. alosztály három jellegzetes képviselője a mezenchimális sejtekben expresszálódó vimentin, az izomsejtekben megjelenő dezmin és a gliális fibrilláris savas protein. Mindhárom homopolimereket alkot.
Hámsejtekben citokeratin, izomsejtekben dezmin, kötőszöveti sejtekben vimentin az intermedier filamentumot alkotó legfontosabb fehérje. A vimentin és a GFAP különböző sejttípusokban eltérő, sejttípus-specifikus hálózatokat képeznek.
Neurofilamentumok
A IV. alosztályba a neuronokban megjelenő kis (NF-L), közepes (NF-M) és nagy (NF-H) molekulatömegű neurofilamentumok tartoznak. A három polipeptid lánc elnevezése a fehérjeláncok molekulasúlyára utal: L = light, könnyű; M = medium, közepes; H = heavy, nehéz.
A neurofilamentumok kopolimereket alkotnak, melyekben a polimer magját az NF-L képezi és ehhez oldalirányban kilógó NF-M és NF-H molekulák asszociálódnak. Ezek a filamentumok különösen fontosak az idegsejtek nyúlványainak, főként az axonoknak a szerkezeti fenntartásában.
Nukleáris laminok
Legősibb képviselőik a laminok, a maghártya belső membránjához kapcsolódva a már említett nukleáris laminát vagy lamina fibrosát alkotják. Az V. alosztály tagjai a laminok, amelyek a humán sejtekben többféle formában mutathatók ki: Lamin A, B1, B2 és C.
A laminok homopolimerekké állnak össze, és a maghártya belső oldalához kapcsolódva azt kimerevítik. A nukleáris lamina hálózatot alkot a sejtmaghártya alatt, meghatározza a sejtmag alakját, és mechanikai kapcsolatot teremt a maghártya, a kromatin és a citoplazmatikus citoszkeleton között.
A hálózat kapcsolata a sejtkapcsoló struktúrákkal
Az intermedier filamentumok térbeli szerveződését számos járulékos fehérje biztosítja. Egyik jellegzetes képviselőjük a plectin, egy hosszú, szálszerű molekula, mely képes keresztkötéseket létrehozni az egyes intermedier filamentumok, illetve az aktinszálak és mikrotubulusok között.
Desmosomes anchor intermediate filaments to the plasma membrane and transmit mechanical forces between adjacent cells. Hemidesmosomes connect intermediate filaments across the plasma membrane to the extracellular matrix.
Más járulékos fehérjék a sejt-sejt, vagy sejt-mátrix kapcsolatot létrehozó deszmoszómákhoz, hemideszmoszómákhoz kapcsolják a sejt IF hálózatát. Így stabil, húzásnak-nyomásnak ellenálló szöveti szerkezet tud kialakulni.
Deszmoszómák
A macula adhaerens, vagyis deszmoszóma pontszerű kapcsolat, amely bőségesen előfordul mechanikai igénybevételnek kitett szövetekben, mint például a hámok és az izomsejtek. Intracellulárisan a citokeratin filamentumokhoz, vagyis intermedier filamentumokhoz kapcsolódik, ami rendkívüli mechanikai szilárdságot biztosít számára.
A deszmoszómák a szomszédos sejtek közötti mechanikai erőket továbbítják. A keratinfilamentumok hálózata a sejtek közötti kapcsolatokhoz rögzülve megakadályozza, hogy a szövetek nyújtás vagy nyomás hatására szétszakadjanak.
Hemideszmoszómák
A hemidesmoszóma „fél” desmoszóma, amely a sejteket a bazális laminához, vagyis az extracelluláris mátrixhoz rögzíti, és így biztosítja a szövetek szilárd rögzítését. A kapcsolat az intermedier filamentumokat a plazmamembránon keresztül a sejten kívüli mátrixhoz köti.
A deszmoszómák és hemideszmoszómák együtt folyamatos mechanikai rendszert hoznak létre a sejten belüli intermedier filamentumhálózat, a plazmamembrán, a szomszédos sejtek és az extracelluláris mátrix között.
Az intermedier filamentumok és a többi citoszkeletális elem
A sejt nem egy stabil struktúra, hanem állandóan és dinamikusan változik. Változik a sejt alakja, változnak a sejtalkotók, változik elhelyezkedésük, kiterjedésük. Ezek a folyamatok mind a citoszkeleton részvételét igénylik.
Ezek a folyamatok a mikrotubulushoz és az aktin filamentumokhoz kapcsolódó motorfehérjék segítségével valósulnak meg. Ehhez a szilárd vázat pedig az intermedier filamentumok hálózata szolgáltatja.
A mikrotubulusok és az aktinfilamentumok dinamikusabb, polarizált rendszereket alkotnak, amelyekhez motorfehérjék kapcsolódnak. Az intermedier filamentumok ezzel szemben főként a mechanikai terhelés elosztását, a sejtek alakjának stabilizálását és a sejtszerkezetek összekapcsolását biztosítják.
Kapcsolat a mikrotubulusokkal
A mikrotubulusok alfa- és béta-tubulin fehérje dimérekből épülnek fel. Ha a mikrotubuláris rendszer sérül, leáll a sejtosztódás, sérül a vezikuláris transzport.
A szekréciós vezikulák szállításáért az ún. mikrotubulusokkal asszociált fehérjék, például a kinezin és a dinein felelősek, amelyek molekuláris motorként működve ATP-t hidrolizálnak, s az így felszabaduló energia terhére képesek irányítani a vezikulák mozgását.
Az intermedier filamentumokhoz nem kapcsolódnak motorfehérjék, de járulékos fehérjék, például a plectin révén mechanikailag összekapcsolódhatnak a mikrotubulusokkal. Ez a kapcsolat lehetővé teszi, hogy a dinamikus mikrotubuláris rendszer mozgásai egy stabilabb, teherbíró citoszkeletális hálózatba illeszkedjenek.
Kapcsolat az aktinfilamentumokkal
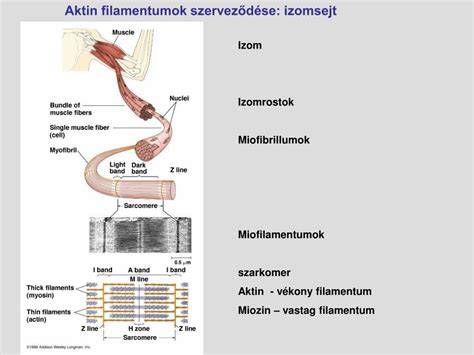
Az aktinfilamentumok fontos szerepet játszanak a plazmamembrán mozgatásában, a sejtosztódásban, az exo- és endocitózisban, a sejtnyúlványok kibocsátásában és általában a sejtmozgásban. Más mikrofilamentumok háromdimenziós struktúrát alkotva meghatározó jelentőségűek a citoplazma áramlásának szabályozásában, illetve a sejt állandóságának fenntartásában.
Izomsejtekben az aktin és miozin filamentumok kapcsolódása eredményezi a kontrakciót, de hasonló mechanizmusok játszanak szerepet a nem izom típusú sejtek mozgásában is. Az intermedier filamentumok a plectinhez hasonló keresztkötő fehérjék segítségével az aktinhálózathoz is kapcsolódhatnak.
A sejten belüli transzport és a sejtszervecskék szervezése
Az endoplazmás retikulum tubulusai kinyúlnak és összehúzódnak a mikrotubulusok mentén. Ugyanígy a Golgi elemei is kiterjedhetnek a citoplazma irányába és visszahúzódhatnak. A másik citoszkeletális elem, az aktin is befolyásolja ezeknek a sejtalkotóknak a szerveződését.
Osztódáskor ezek a sejtalkotók látszólag eltűnnek, de ez csak átmeneti, mert az osztódás végén a citoszkeleletonnal együtt újraszerveződve ismét megjelennek. Az intermedier filamentumok ebben a térbeli szerveződésben stabilizáló és mechanikai támasztó rendszert biztosítanak.
Rendkívül fontos szerepük van a sejtkompartmentek közötti transzportfolyamatokban. A mikrotubulusok mentén szállító kinezin és dinein motorfehérjék részt vesznek az axonális és a Golgihoz kapcsolódó vezikuláris transzportban, miközben az intermedier filamentumok a citoplazma mechanikai térszerkezetét tartják fenn.
Az aktin és a vezikuláris transzport
Ahogy a szekréciós vezikulumok utazásuk során elérik a sejt perifériáján a plazmamembrán alatti aktinfilamentumokban gazdag területet, felmerül a kérgi aktinréteg szerepe is. Bizonyított, hogy a kérgi aktin filamentumrendszer az itt található miozin motorfehérje segítségével szerepet játszik a szekrécióban.
Az endocitózissal bekerülő vezikulumoknak először a kortikális aktinhálózaton kell átjutniuk, csak ezután szállítódhatnak tovább más kompartmentek irányába. A mikropinocitózisban és a fagocitózisban is szükséges a kérgi aktinfilamentumok közreműködése.
Az RNS-ek szállítása
A citoszkeleton szerepet játszik az RNS-ek szállításában. Ez a szerepkör a transzláció új szabályozási lehetőségét veti fel. A citoplazmában az mRNS-ek megoszlása nem véletlenszerű, hanem szabályozott folyamat.
A különböző mRNS-ek szállítását a sejtváz elemei végzik. A transzlációhoz az is szükséges, hogy az mRNS molekula a rendeltetési helyére kerüljön és kihorgonyzódjon a sejtváz megfelelő elemeihez, ahol azután találkozik a transzlációhoz szükséges többi komponenssel.
Intermedier filamentumok és mitokondriumok
Az intermedier filamentumok a citoplazmatikus tér egyik kulcsfontosságú szervezői. A mitokondriumokkal való kölcsönhatásuk jól szemlélteti, hogy az intermedier filamentumhálózat nem egyszerűen passzív mechanikai váz, hanem a sejtorganellumok térbeli elhelyezkedését és működését is befolyásoló rendszer.
Az intermedier filamentumok és a mitokondriumok közötti kölcsönhatások közvetlen és közvetett módon is befolyásolhatják a mitokondriumok morfológiáját, szubcelluláris lokalizációját és funkcióját. Az intermedier filamentumok és a mitokondriumok közötti kapcsolat zavarai emberi betegségekhez vezethetnek.
A mitokondriumok és az intermedier filamentumhálózat kölcsönös szervező szerepe különösen azokban a sejttípusokban jelentős, amelyek nagy mechanikai terhelésnek vagy jelentős energiaigénynek vannak kitéve. A filamentumok a citoplazmatikus tér felosztásában, a mitokondriumok elhelyezkedésében és a sejtszerkezetek közötti kapcsolatok fenntartásában vesznek részt.
Szöveti mechanikai integritás
Az intermedier filamentumok főleg mechanikai funkciót töltenek be a sejtekben. A hálózat a sejtmag körül és a sejtperiféria felé húzódva olyan folyamatos teherelosztó rendszert alkot, amely a sejtre ható húzó- és nyomóerőket a plazmamembrán, a sejtkapcsoló struktúrák és az extracelluláris mátrix között továbbítja.
A keratinfilamentumokkal megerősített deszmoszómák a szomszédos sejtek közötti mechanikai kohéziót biztosítják. A hemideszmoszómák az intermedier filamentumhálózatot a bazális laminához kapcsolják, így a hámsejtek nemcsak egymáshoz, hanem a környezetükhöz is stabilan rögzülnek.
A haj, amely keresztkötött intermedier filamentumokból épül fel, jól szemlélteti e struktúrák hajlékonyságát és nagy szakítószilárdságát. A filamentumok eredeti hosszuk háromszorosára is nyújthatók anélkül, hogy elszakadnának.
Betegségek és genetikai eltérések
Az intermedier filamentumok mutációi számos betegséget okoznak. A citoplazmatikus intermedier filamentumokban vagy az intermedier filamentumokhoz kapcsolódó sejtkapcsoló struktúrákban kialakuló molekuláris hibák a bőrsejtek szétszakadásához és hólyagos bőrbetegségekhez vezethetnek.
Molecular defects in cytoplasmic intermediate filaments or junctions associated with intermediate filaments result in rupture of skin cells and blistering diseases. Defects in lamins cause a bewildering array of diseases.
Epidermolysis bullosa simplex
Klasszikus példa az epidermolysis bullosa simplex, más néven „pillangóbőr-betegség”. Ezt a betegséget a citokeratin hibás génje okozza. Ennek következtében a bőrsejtek hajlamosak a szétválásra és a repedésre még minimális mechanikai stressz hatására is, ami fájdalmas hólyagok kialakulásához vezet.
Kb. 30 féle citokeratin ismert, és számos mutáció okoz örökletes bőrbetegséget, mint például az epidermolítikus hiperkeratózist. Az érintett egyének gyakran szenvednek más problémáktól is, például romló és kihulló fogaktól.
Neurofilamentumokhoz kapcsolódó betegségek
Az idegsejtek jellemző neurofilamentjei (NF) három polipeptid lánca közül a könnyű lánc egyes mutációi a Charcot-Marie-Tooth betegség egyik típusát, az axonális 2E formát okozzák.
Laminokhoz kapcsolódó betegségek
A laminok hibái a sejtmag mechanikai tulajdonságainak, alakjának és működésének zavarát okozhatják. A lamina a maghártya belső oldalához kapcsolódva mechanikailag stabilizálja a sejtmagot, ezért szerkezeti eltérései különböző sejttípusokat és szöveteket érintő betegségekhez vezethetnek.
Diagnosztikai jelentőség
Az intermedier filamentumok monomerjei sejttípus-, illetve szövetspecifikusak. Az intermedier filamentumoknak ezt a sajátságát a daganatdiagnosztikában is felhasználják, ugyanis a tumorsejt azt a típusú intermedier filamentumot termeli, amilyen szövettípusból származik.
Az intermedier filamentumok sejtspecifikus összetételüknek köszönhetően óriási jelentőséggel bírnak a daganatok szöveti eredetének diagnosztikájában. Az orvosok antitestekkel történő festést használnak specifikus IF-fehérjetípusok ellen.
Ha például egy nyirokcsomóban citokeratint tartalmazó sejtek jelennek meg, ami a hámszöveti sejtekre jellemző, az azt jelenti, hogy egy epiteliális daganat áttétéről van szó, mivel az egészséges nyirokcsomók nem tartalmaznak citokeratint.
A specifikus intermedier filamentumfehérjék azonosítása ezért segíthet annak meghatározásában, hogy egy daganat melyik szövettípusból származik. Ez különösen fontos a metasztázisok helyes diagnózisában és a kezelés megtervezésében.
Az intermedier filamentumok és a sejtközötti junkciók
A sejtbiológiában kulcsszerepet játszanak azok a struktúrák, amelyek biztosítják a mechanikai ellenállást és a sejtek közötti kommunikációt. Két ilyen fontos rendszer az intermedier filamentumok és a sejtközötti junkciók.
A sejtközötti junkciók speciális struktúrák, amelyek lehetővé teszik a szomszédos sejteknek egymással való összekapcsolódását, kommunikációját és gátak létrehozását. Ezek a struktúrák nemcsak a szövetek integritását tartják fenn, hanem jelentős diagnosztikai és klinikai hatással is bírnak.
A zonula occludens, vagyis zárókapcsolat, övszerű kapcsolat, amely a sejt apikális végéhez közelebb körbeveszi az egész sejtet. A zonula adhaerens a zonula occludens alatt elhelyezkedő övszerű kapcsolat, amely intracellulárisan a citoszkeleton aktinfilamentumaihoz kapcsolódik.
A deszmoszóma intracellulárisan a citokeratin intermedier filamentumokhoz kapcsolódik, míg a hemideszmoszóma a sejtet a bazális laminához rögzíti. A gap junction, vagyis nexus, csatornás kapcsolat, amely lehetővé teszi ionok és kis molekulák közvetlen cseréjét a szomszédos sejtek között.
Az intermedier filamentumok evolúciós és sejttani sajátosságai
Az intermedier filamentumfehérjék génjei baktériumokban és az állati leszármazási vonal magasabb ágaiban is megtalálhatók, de jelenlétüket az állatok előtt elágazó eukariótákban nem igazolták. A baktérium- és állati gének külön-külön is kialakulhattak, ami a konvergens evolúció ritka példája lenne, vagy a gének laterális géntranszferrel kerülhettek át az élet különböző doménjei között.
A Caulobacter crescentus baktériumban az intermedier filamentumok az aszimmetrikus sejtalak kialakításához szükségesek. Az állati intermedier filamentumfehérjék génjei a korai soksejtű állatokban jelentek meg, és nukleáris laminokat kódoltak.
A legtöbb soksejtű állat, köztük a gerinchúrosok, puhatestűek, rovarok és fonálférgek, megőrizte a laminokat kódoló géneket. A citoplazmatikus intermedier filamentumok a laminokból kialakult, módosult és tovább diverzifikálódott rendszerekből származhatnak.
Az intermedier filamentumhálózat a növényekből és a gombákból hiányzik, továbbá soksejtű állatokban a laminok ugyan mindig expresszálódnak, de a citoplazmatikus intermedier filamentumfehérjék egyes nagy állatcsoportokban, például az ízeltlábúak sejtjeiben hiányoznak.
Az intermedier filamentumok és a mikrotubulusok fő különbségei
| Tulajdonság | Intermedier filamentumok | Mikrotubulusok |
|---|---|---|
| Polaritás | Nincs polaritásuk, a két vég ekvivalens | Polarizált struktúrák |
| Építőfehérjék | Szövetspecifikus, fibrózus fehérjék | Alfa- és béta-tubulin dimérek |
| Nukleotidkötés | Nem kötnek nukleotidokat | A tubulin GTP-hez kapcsolódik |
| Motorfehérjék | Nem kapcsolódnak hozzájuk motorfehérjék | Kinezin és dinein működik rajtuk |
| Fő funkció | Mechanikai stabilitás, erőátvitel | Transzport, sejtosztódás, organellumszervezés |
| Dinamika | Kevésbé dinamikus, de alegységeik cserélődhetnek | Gyors polimerizáció és depolimerizáció |
Az intermedier filamentumok nem polarizáltak, nincs polaritásuk, és polimerizációjuk nem igényel ATP-t vagy GTP-t. Fő funkciójuk a mechanikai ellenállás.
A mikrotubulusok ezzel szemben polarizáltak, GTP-t igényelnek a polimerizációhoz, és szerepet játszanak a sejten belüli transzportban és az osztódásban. A két rendszer nem egymás helyett működik, hanem a citoszkeleton egymással összekapcsolódó, eltérő feladatokra specializálódott részeit alkotja.
Az intermedier filamentumhálózat jelentősége
Az intermedier filamentumok erős, mégis hajlékony, körülbelül 10 nm átmérőjű polimerek, amelyek a sejtmag és a plazmamembrán között elágazó hálózatot alkotnak. A hálózat a sejtkapcsoló struktúrákon keresztül a szomszédos sejtekhez és az extracelluláris mátrixhoz is kapcsolódik.
Sejttípus- és szövetspecifikus fehérjéik révén az intermedier filamentumok a hámsejtek, izomsejtek, kötőszöveti sejtek, idegsejtek, gliasejtek és a sejtmag sajátos mechanikai igényeihez igazodnak. A keratin, a vimentin, a dezmin, a GFAP, a neurofilamentumok és a laminok eltérő, de egymással rokon filamentumrendszereket hoznak létre.
Az intermedier filamentumhálózat biztosítja a sejtek mechanikai szilárdságát, megakadályozza a túlzott megnyúlást, összekapcsolja a sejtkapcsoló struktúrákat, támogatja a sejtorganellumok térbeli szerveződését, és hozzájárul a mitokondriumok elhelyezkedésének és működésének szabályozásához.
tags: #intermedier #filamentum #halozat